Diversité génétique chez le chien :
pourquoi elle conditionne l’avenir d’une race
La diversité génétique chez le chien conditionne la santé, la fertilité et l’avenir d’une race.
Elle donne à la sélection de la marge, des alternatives et une capacité d’adaptation.
Quand elle s’érode, les choix se réduisent.
Comprendre ce capital biologique, c’est éviter de préserver seulement l’apparence d’une race tout en laissant disparaître ce qui lui permet de durer.
Diversité génétique chez le chien : l’essentiel à retenir
Une race ne se préserve pas seulement en conservant son type. Elle se préserve aussi en gardant assez de diversité génétique pour rester fertile, robuste et sélectionnable.
Le problème commence quand la race devient trop homogène. Les mêmes ancêtres reviennent, les mêmes variants se concentrent, les options reproductives se réduisent. Le chien peut rester conforme au standard, mais la population perd silencieusement de la marge biologique.
La solution n’est pas de rejeter la sélection ni de présenter l’outcross comme une formule magique. Il faut mesurer, comparer et piloter : taux de consanguinité, segments d’homozygotie, population effective, parenté moyenne, santé des lignées et contribution réelle des reproducteurs.
L’enjeu est donc simple : préserver une race ne consiste pas seulement à conserver son apparence, son type ou son standard. Il faut aussi protéger ce qui lui permet encore d’évoluer, de produire des chiens sains et de garder des choix pour demain.
Qu’est-ce que la diversité génétique ?
La diversité génétique chez le chien désigne la variété des versions de gènes, ou allèles, présentes dans une population. Chez le chien, elle ne se résume pas au nombre d’individus. Elle décrit surtout la richesse biologique disponible dans la race.
C’est le point clé : une race peut compter beaucoup de chiens et pourtant disposer d’une diversité limitée si la majorité descend des mêmes lignées ou des mêmes reproducteurs.
La diversité fonctionne comme une réserve de choix. Quand elle est abondante, l’éleveur peut sélectionner avec plus de marge. Quand elle devient rare, il ne choisit plus seulement ce qu’il veut produire : il choisit surtout parmi ce qui reste possible.
Elle permet de combiner des qualités, de limiter la concentration de variants délétères, de préserver des lignées sous-représentées et de garder une vraie capacité de sélection au fil des générations.
À l’inverse, quand cette réserve se vide, la sélection devient plus compliquée. On ne choisit plus entre plusieurs bonnes options. On arbitre entre des contraintes.
Pourquoi la diversité génétique chez le chien est essentielle
La diversité génétique soutient plusieurs fonctions vitales : fertilité, immunité, robustesse, longévité, capacité d’adaptation et marge de sélection. Elle ne garantit pas la santé de chaque chien. Mais elle augmente les options disponibles pour la population.
Dans une race canine, la sélection cherche souvent à stabiliser un type, un tempérament ou des aptitudes. C’est légitime. Mais cette sélection ne peut travailler que sur la variation encore présente.
Sans variation, il n’y a plus grand-chose à sélectionner.
Et voici le risque concret : plus une population devient homogène, plus ses individus ont de chances de porter les mêmes variants hérités des mêmes ancêtres. Certains variants sont neutres. D’autres peuvent être délétères.
Les travaux en conservation génétique rappellent un principe simple : une population durable doit conserver assez de variation pour limiter la dérive génétique, contenir la consanguinité et garder une capacité d’adaptation au fil des générations (Frankham et al., 2010).
Diversité génétique et consanguinité : deux notions liées, mais différentes
La consanguinité mesure l’augmentation de l’homozygotie liée à l’apparentement. La diversité génétique mesure la richesse des variants disponibles dans la population. Les deux notions sont liées, mais elles ne disent pas exactement la même chose.
Une population peu diverse conduit plus facilement à de la consanguinité, car les reproducteurs finissent par partager une grande partie de leur ascendance. Mais regarder seulement un taux de consanguinité ne suffit pas à comprendre toute la diversité disponible.
En effet, le taux de consanguinité parle d’un risque d’homozygotie alors que la diversité génétique parle du stock biologique disponible. Confondre les deux donne un raisonnement faible.
Le bon objectif n’est donc pas “zéro consanguinité”. Dans une race fermée, ce n’est pas réaliste. Le vrai objectif est de ralentir la perte de diversité, d’éviter les reconcentrations inutiles et de préserver les options futures.
Les principaux indicateurs à suivre
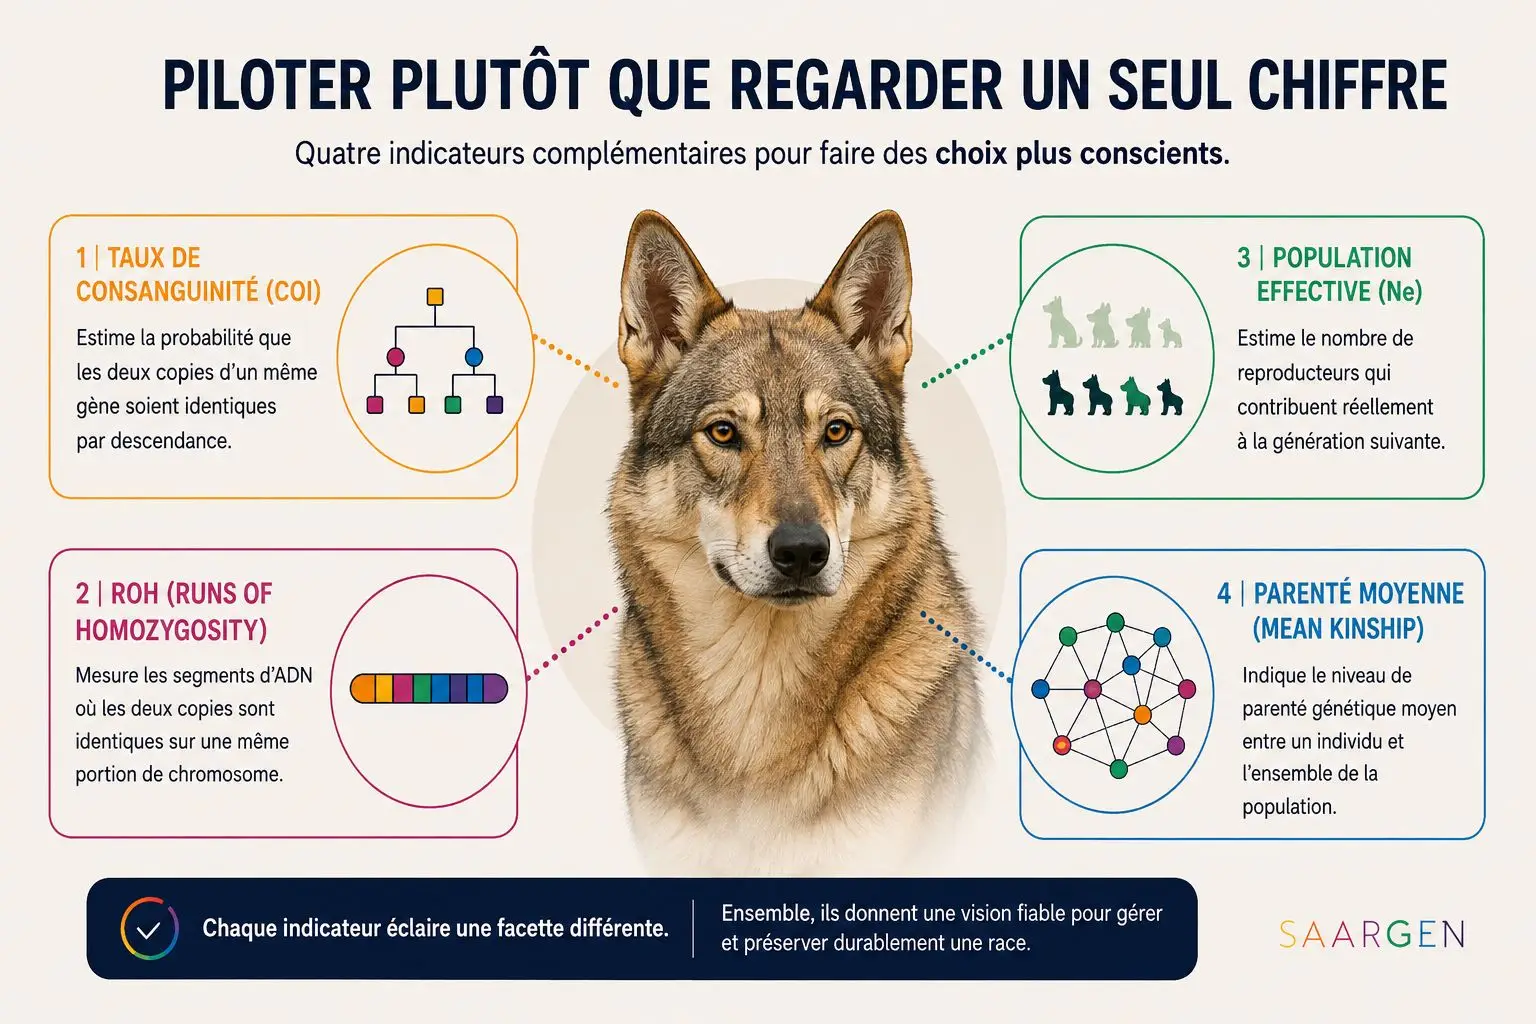
Aucun indicateur ne résume seul l’état génétique d’une race. C’est une erreur fréquente : chercher un chiffre unique, puis lui confier toute la décision.
Le taux de consanguinité pedigree donne une estimation généalogique.
Les ROH, c’est-à-dire les segments d’homozygotie, montrent des zones d’homozygotie réellement visibles dans l’ADN.
La population effective renseigne sur le nombre de reproducteurs qui contribuent réellement à la génération suivante.
La parenté moyenne situe un chien par rapport à toute la population.
Pris ensemble, ces indicateurs changent le niveau d’analyse. On ne regarde plus seulement un mariage. On regarde la trajectoire de la race.
Les mesures génomiques sont particulièrement utiles lorsque le pedigree est incomplet ou lorsque la consanguinité ancienne est mal captée par la généalogie disponible (Kardos et al. ,2015).
Ce qui se passe quand une race perd sa diversité
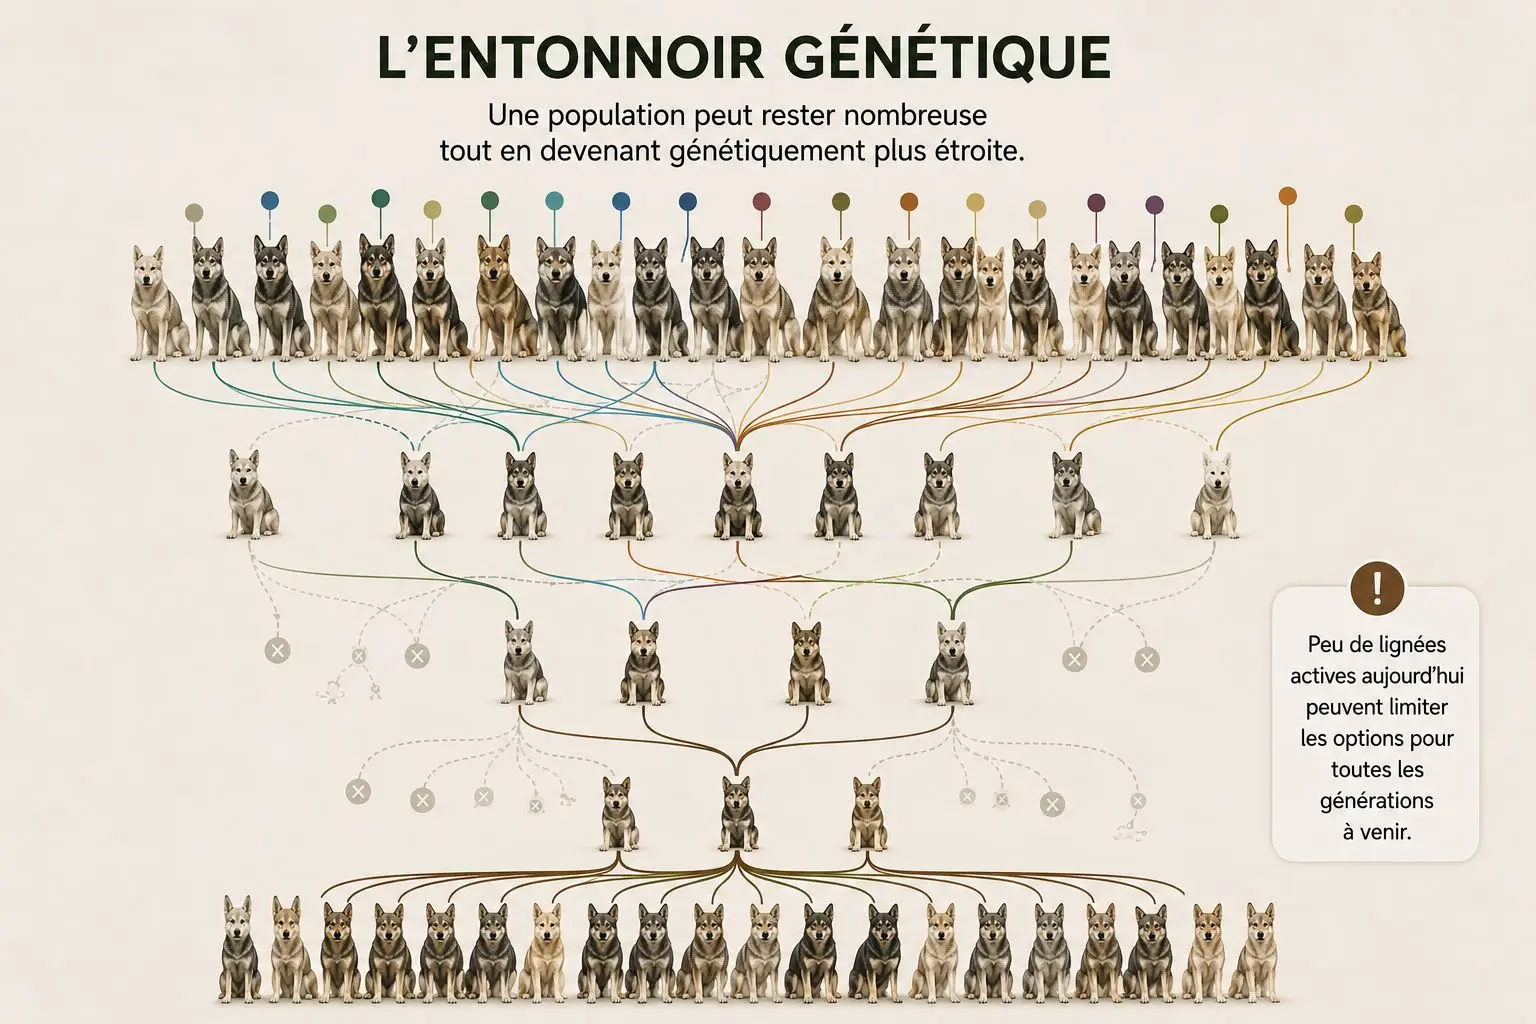
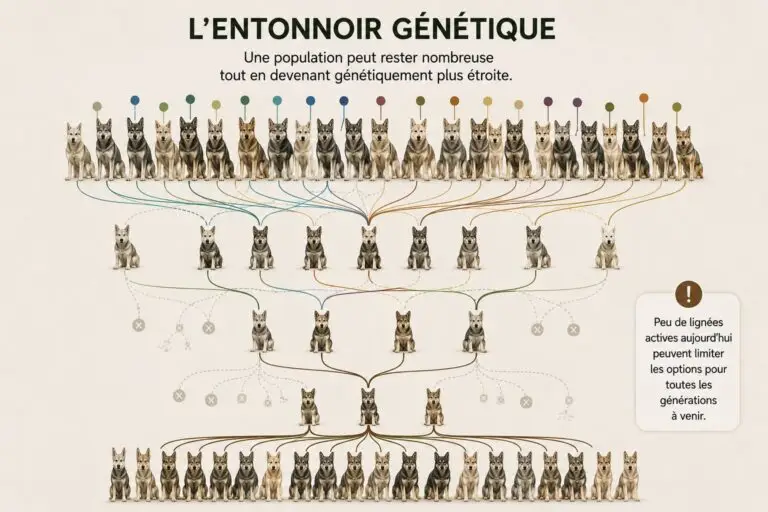
La perte de diversité ne se voit pas toujours immédiatement. Le type peut rester stable. Les chiens peuvent continuer à ressembler à la race. Pourtant, au niveau de la population, le choix génétique se contracte.
Cela se produit par plusieurs mécanismes : fermeture du livre des origines, livre ouvert mais géré dans les faits comme un livre fermé, goulots d’étranglement, faible nombre de fondateurs, baisse des naissances, surutilisation de certains mâles et disparition de lignées peu représentées.
Mais le piège principal est là : dans une population fermée, un variant perdu ne revient pas naturellement. Sans apport extérieur, la sélection ne travaille que sur la diversité restante. Elle peut favoriser certains variants, en écarter d’autres, mais elle ne recrée pas ceux qui ont disparu.
Chez les chiens de race, plusieurs analyses de pedigrees ont montré que les pratiques de sélection, les livres fermés et les déséquilibres de reproduction peuvent entraîner une forte perte de diversité et une augmentation de l’apparentement (Calboli et al. ,2008 ; Leroy, 2011).
Le cas particulier des races à petits cheptels
Dans une race à petit cheptel, le problème devient vite systémique. Même avec de bonnes intentions, les éleveurs peuvent se retrouver face à peu d’options réellement utilisables.
Une race peut compter plusieurs centaines de chiens et pourtant n’avoir qu’un petit nombre de reproducteurs actifs, disponibles, sains, non trop apparentés et compatibles avec les objectifs de sélection.
Donc le nombre total de chiens rassure parfois à tort. Ce qui compte, c’est la population effective : ceux qui transmettent réellement leurs gènes à la génération suivante.
Quand cette base se réduit, la dérive génétique agit plus vite. Des variants disparaissent par hasard. D’autres deviennent fréquents parce qu’ils sont portés par des reproducteurs très utilisés. La diversité baisse, même sans accouplement extrême.
Dans ce contexte, gérer mariage par mariage devient insuffisant. Il faut piloter la population, pas seulement optimiser une portée.
Pourquoi la diversité génétique chez le chien est une assurance biologique
La diversité génétique est une assurance biologique. Elle ne promet pas qu’aucun problème n’apparaîtra. Elle donne plutôt à la race des marges de correction lorsque des problèmes apparaissent.
C’est là qu’il faut être clair : la diversité génétique n’est pas l’opposé de la sélection. C’est ce qui permet à la sélection de rester possible.
Sans diversité, l’éleveur peut encore choisir. Mais il choisit dans un espace de plus en plus étroit. À terme, chaque décision devient un compromis plus dur : santé contre type, tempérament contre disponibilité, faible taux de consanguinité contre lignées déjà surreprésentées.
Avec davantage de diversité, la sélection reste exigeante. Mais elle dispose d’une matière première plus large pour construire une population viable.
Que peuvent faire éleveurs et clubs
La première action consiste à cesser de raisonner uniquement à l’échelle du couple reproducteur. Un mariage peut sembler correct isolément et devenir mauvais s’il répète une tendance déjà excessive dans la population.
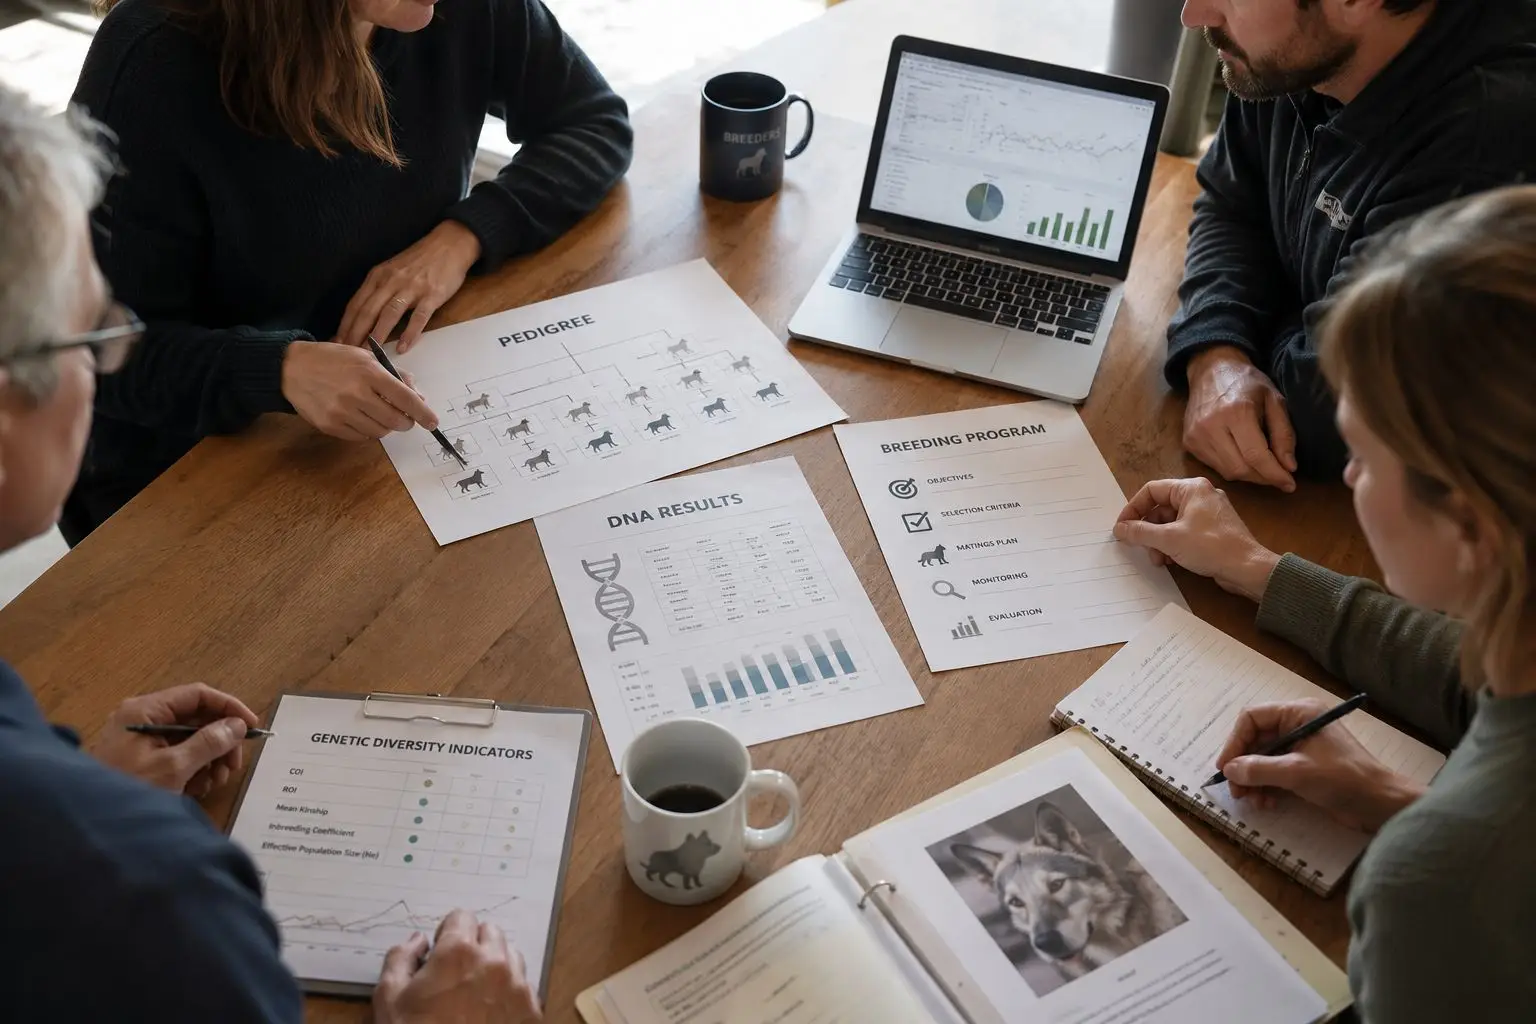
Les clubs et les éleveurs peuvent suivre plusieurs signaux simples : nombre de naissances, nombre de reproducteurs actifs, contribution des mâles, lignées sous-représentées, taux de consanguinité, ROH, parenté moyenne et évolution de la population effective.
Ensuite, il faut limiter les réflexes qui appauvrissent une race : surutilisation d’un mâle populaire, abandon des lignées moins visibles, sélection trop concentrée sur quelques familles gagnantes, comparaisons de taux calculés avec des méthodes différentes.
En pratique, cela suppose des données partagées, des seuils cohérents, une lecture collective et une stratégie suivie.
Application à SaarGen
Pour SaarGen, la diversité génétique n’est pas un argument cosmétique. C’est le cœur du sujet. Le chien-loup de Saarloos illustre le cas d’une race à base étroite, où la conservation du type ne peut pas être séparée de la viabilité génétique à long terme.
Un programme d’outcross structuré ne doit donc pas être présenté comme une solution magique. Ce serait faux. Un apport extérieur mal piloté peut créer de la confusion, disperser les objectifs ou reconcentrer trop vite les mêmes lignées.
L’intérêt de SaarGen est ailleurs : restaurer une diversité mesurable, suivre les générations, évaluer les reproducteurs avec plusieurs indicateurs et conserver une trajectoire cohérente avec l’identité de la race.
Le bénéfice attendu n’est pas seulement de faire baisser un chiffre. C’est de redonner à la population plus d’options : plus de variation utile, plus de combinaisons possibles, plus de marge de sélection et moins de dépendance à quelques lignées dominantes.
Diversité génétique chez le chien : ce qu’il faut retenir
La diversité génétique est le capital biologique d’une race. Elle conditionne la fertilité, la robustesse, la capacité de sélection et les options disponibles pour les générations futures.
La consanguinité, les ROH, la population effective et la parenté moyenne ne sont pas des détails techniques. Ce sont des signaux de pilotage. Pris isolément, ils peuvent tromper. Croisés ensemble, ils donnent une lecture plus juste.
Dans les races à petits cheptels, l’enjeu n’est pas de trouver un chiffre rassurant. L’enjeu est de maintenir une population capable de durer.
Ne jugez pas une combinaison sur un seul pourcentage. Comparez les indicateurs, surveillez la contribution des reproducteurs et raisonnez à l’échelle de la population. C’est ainsi qu’une race se préserve réellement.
Questions fréquemment posées
Sources
Références scientifiques
Les sources ci-dessous ont été utilisées pour la rédaction de cet article.
Les liens redirigeant directement vers les sites concernés sont intégrés dans le corps de texte de l'article.
1- Bannasch, D., Famula, T., Donner, J., Anderson, H., Honkanen, L., Batcher, K., Safra, N., Thomasy, S., & Rebhun, R. (2021). The effect of inbreeding, body size and morphology on health in dog breeds. Canine Medicine and Genetics, 8(1), 12. DOI : 10.1186/s40575-021-00111-4.
2- Calboli, F. C. F., Sampson, J., Fretwell, N., & Balding, D. J. (2008). Population structure and inbreeding from pedigree analysis of purebred dogs. Genetics, 179(1), 593-601. DOI : 10.1534/genetics.107.084954.
3- Frankham, R., Ballou, J. D., & Briscoe, D. A. (2010). Introduction to Conservation Genetics. Cambridge University Press.
4- Kardos, M., Luikart, G., & Allendorf, F. W. (2015). Measuring individual inbreeding in the age of genomics: marker-based measures are better than pedigrees. Heredity, 115(1), 63-72. DOI : 10.1038/hdy.2015.17.
5- Leroy, G. (2011). Genetic diversity, inbreeding and breeding practices in dogs: results from pedigree analyses. The Veterinary Journal, 189(2), 177-182. DOI : 10.1016/j.tvjl.2011.06.016.
6- Meyermans, R., Gorssen, W., Buys, N., et al. (2020). How to study runs of homozygosity using PLINK? A guide for analyzing medium density SNP data in livestock and pet species. BMC Genomics, 21, 94. DOI : 10.1186/s12864-020-6463-x.