Gestion des populations :
pourquoi une race ne se préserve pas portée par portée
La gestion des populations canines devient indispensable quand une race ne peut plus compter sur une succession de décisions individuelles pour préserver son avenir.
Un bon mariage peut produire une bonne portée, mais cela ne suffit pas à maintenir une population viable, diverse et sélectionnable.
Le défi est d'ordre collectif.
Découvrez comment garder des options pour demain.
L'essentiel à garder en tête
Une race ne se préserve pas uniquement par de bons mariages isolés. Elle se préserve également par une capacité collective à maintenir assez de diversité, de reproducteurs disponibles et de marges de sélection pour les générations suivantes.
Le risque apparaît lorsque chaque décision semble raisonnable localement, mais que l’addition de ces choix réduit progressivement les options de la population. Alors, des chiens peuvent devenir trop populaires, des lignées trop représentées, la population effective trop petite et des lignées utiles peuvent disparaître.
La solution n’est pas de retirer toute liberté aux éleveurs, mais de rendre visibles les indicateurs qui évaluent réellement la population : évolution des naissances, reproducteurs actifs, équilibre mâles-femelles, population effective, contribution des reproducteurs, parenté moyenne, indice de fixation, structure génétique, etc.
L’objectif de la gestion des populations canines est simple : permettre aux éleveurs de décider avec une vue d’ensemble. Parce qu'une race ne se pilote pas seulement portée par portée. Une race se pilote collectivement.
01
L’élevage pure race reste souvent géré portée par portée
La plupart des décisions d’élevage commencent par une question concrète : quel mâle pour quelle femelle ? Ce réflexe est normal. L’éleveur travaille avec ses chiens, ses contraintes, ses objectifs de type, de santé, de tempérament et de disponibilité.
Cette échelle de décision reste nécessaire. En effet, aucun pilotage de population ne remplace le jugement de l’éleveur sur ses chiens. Mais elle devient insuffisante lorsque la race est petite, fermée ou déjà fortement apparentée.
Une portée peut être cohérente à l’échelle d’un élevage et contribuer malgré tout à une trajectoire collective défavorable.
Les travaux sur les pedigrees de chiens de race (Calboli et al. 2008) montrent que la structure des populations, les livres fermés et les déséquilibres de contribution peuvent augmenter l’apparentement et réduire la diversité disponible au fil du temps (Leroy, 2011).
Le raisonnement basé uniquement sur la portée répond à une question courte : que va apporter cette combinaison à mon élevage ? La gestion des populations canines pose une question plus large : que produit cette combinaison dans la trajectoire de la race ?
02
Pourquoi des décisions individuelles raisonnables peuvent produire un mauvais résultat collectif
Une décision individuelle peut être prudente, argumentée et cohérente. Pourtant, si beaucoup d’éleveurs prennent des décisions similaires sans coordination, le résultat collectif peut devenir défavorable.
C’est un mécanisme classique des petites populations. Chaque choix pris isolément semble acceptable. Mais l’accumulation de ces choix individuels peut réduire le nombre de lignées réellement présentes, déséquilibrer la contribution des mâles, accélérer la dérive génétique et faire disparaître des variants rares.
Dans une population fermée, la sélection appliquée par les éleveurs impacte la diversité existante car elle ne permet pas de réintroduire les variants perdus. C’est l’un des principes centraux de la conservation génétique : la durabilité d’une population dépend de sa capacité à limiter la perte de variation et la hausse de consanguinité au fil des générations (Frankham, Ballou & Briscoe, 2010).
Le piège est donc discret. Personne n’a forcément pris une mauvaise décision. Mais pour autant, la race peut tout de même perdre des options, parce qu’aucun niveau collectif n’a surveillé l’effet cumulé.
La gestion des populations canines sert précisément à éviter ce pilotage à l’aveugle. Elle ne remplace pas les choix individuels ; elle les replace dans une trajectoire mesurable.
03
Le bon reproducteur n’est pas seulement le meilleur chien
En élevage, il est logique de rechercher de bons reproducteurs : chiens sains, stables, typés, fonctionnels et cohérents avec l’objectif de race. Ce critère reste d'ailleurs indispensable.
Mais dans une petite population, le meilleur chien n’est pas toujours le meilleur choix pour la race. Par exemple, un reproducteur très qualitatif peut déjà appartenir à une lignée largement représentée. À l’inverse, un chien moins visible peut porter une contribution génétique plus rare et plus utile à conserver.
C’est ici que la notion de contribution populationnelle devient décisive. En effet, un reproducteur ne doit pas seulement être évalué pour ce qu’il peut produire dans une portée. Il doit aussi être évalué pour ce qu’il ajoute, conserve ou reconcentre dans la population.
La parenté moyenne, ou mean kinship, aide à lire cette dimension : elle situe un individu par rapport à l’ensemble de la population. Plus elle est élevée, plus le chien est génétiquement proche de ce qui est déjà représenté ; plus elle est basse, plus sa contribution peut être rare, sous réserve de qualité, de santé et de comportement.
Le raisonnement actuel qui consiste à dire “utilisons les meilleurs chiens” doit donc évoluer vers "parmi les bons chiens, lesquels aident aussi la population à garder des options ?”
04
Gestion des populations canines : que faut-il réellement surveiller ?
Une race ne se pilote pas avec un chiffre isolé. En effet, chercher l’indicateur magique serait une erreur car aucun taux de consanguinité, aucun score ADN et aucun graphique ne résume à lui seul l’état réel d’une population.
En fait, la bonne question n’est pas seulement : “quel est le niveau de consanguinité ?”, mais : “la population conserve-t-elle assez de reproducteurs, de diversité et d’options pour les générations suivantes ?”
Pour y répondre, la gestion des populations canines croise plusieurs familles d’indicateurs : démographie reproductive, population effective, contribution génétique, parenté, diversité génomique et structure de population. Enfin, les taux de consanguinité et les ROH complètent cette lecture, mais ils ne remplacent pas pour autant une surveillance collective de la trajectoire de la race.
Une race ne se lit donc pas avec un seul chiffre. Les cartes suivantes montrent pourquoi il faut croiser plusieurs indicateurs : certains décrivent l'activité d'élevage, d'autres la trajectoire génétique de la population et d'autres viennent compléter la lecture à partir de l'ADN.
05
Gestion des populations canines : du standard à l’observatoire
Le standard reste un outil central. Il décrit une direction, un type, des proportions, parfois des aptitudes et des traits comportementaux attendus. Il permet ainsi de reconnaître une race.
Mais le standard ne mesure pas la diversité génétique. En effet, il ne dit pas combien de reproducteurs contribuent réellement, quelles lignées disparaissent, quels mâles sont utilisés trop souvent, ni si la population effective se maintient. Par contre, la gestion des populations canines rend cela possible.
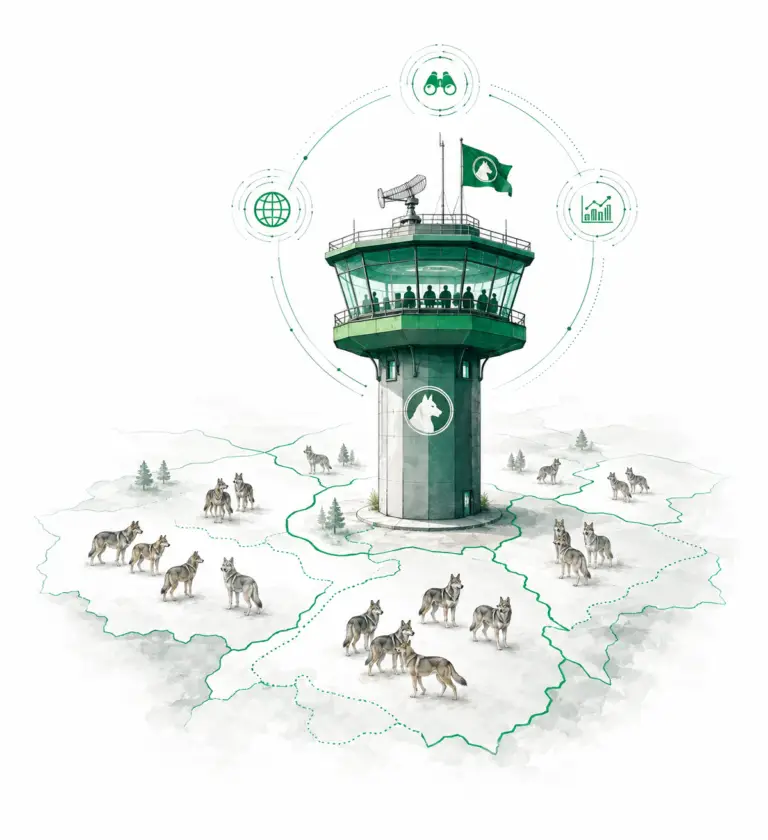
Le rôle moderne d’un club de race ne devrait donc pas se limiter à préserver une image. Notamment dans les races à petit cheptel, il devrait au contraire évoluer vers un rôle d’observatoire : collecter, structurer et publier les signaux essentiels de la population.
Observer ne signifie pas qu'il faut imposer chaque mariage mais plutôt de rendre visibles les tendances : effectifs, naissances, reproducteurs actifs, répartition mâles-femelles, consanguinité, diversité, lignées sous-représentées, contribution des reproducteurs et évolution internationale.
Un club de race qui ne produit pas ces données laisse les éleveurs décider dans le brouillard. Mais un club de race qui les rend lisibles ne retire pas non plus la responsabilité aux éleveurs ; au contraire, il améliore la qualité de leurs décisions.
06
Une race est internationale, même si sa gestion reste nationale
La gestion des races reste souvent nationale : clubs nationaux, règlements nationaux, livres d’origines nationaux, habitudes de sélection nationales. Mais la génétique, elle, ne connaît pas ces frontières administratives.
Une race circule par les chiens, les importations, les saillies, les lignées et les descendants. Par exemple, un reproducteur utilisé dans un pays peut peser sur plusieurs générations dans un autre. Mais aussi, une lignée négligée localement peut être importante à l’échelle internationale.
C’est pourquoi une race ne peut pas être correctement évaluée si chaque pays observe seulement son propre périmètre. Le risque est de surestimer la diversité réelle parce que les mêmes origines réapparaissent sous des affixes, des bases de données ou des circuits différents.
Une gestion de population canine sérieuse doit donc distinguer les niveaux : gestion administrative nationale et lecture génétique internationale. Dans une race à faible cheptel, cette différence est d'autant plus décisive.
Le bon niveau d’analyse n’est pas seulement le club, l’élevage ou le pays. C’est aussi et surtout la population reproductrice réellement connectée.
07
Pourquoi un outcross sérieux est une forme avancée d’élevage responsable
Un outcross sérieux n’est pas un abandon de l’élevage responsable. Au contraire, c’est une forme plus exigeante de gestion de population lorsqu’un diagnostic montre que les marges internes deviennent insuffisantes.
La première réponse doit toujours être de mieux utiliser ce qui existe : par exemple limiter les concentrations, préserver les lignées utiles, diversifier les reproducteurs, suivre les indicateurs et éviter les décisions répétitives. L’outcross ne doit pas devenir non plus une réponse automatique.
Mais lorsque la population effective reste faible, que la diversité disponible s’érode, que les options reproductives se réduisent et que plusieurs indicateurs convergent, refuser d’étudier l’ouverture peut alors devenir une posture idéologique plus qu’une stratégie.
Un programme d’outcross ne réussit pas parce qu’un croisement a eu lieu. Il réussit si l’apport introduit est conservé, réparti, suivi et intégré dans plusieurs branches utilisables de la population. Les modèles sur le sauvetage génétique par outcross chez le chien montrent d'ailleurs que des apports trop faibles ou suivis de retours trop rapides vers la population initiale peuvent produire un effet limité (Windig & Doekes, 2018).
C’est pourquoi l’outcross, lorsqu’il est justifié, doit être pensé comme une extension de la gestion de population canine : diagnostic, donneurs, suivi, générations, indicateurs et gouvernance.
08
Gestion des populations canines : ce que cela change pour les éleveurs
Pour l’éleveur, un vrai pilotage des populations canines ne signifie pas perdre son rôle. Il signifie décider avec plus d’informations.
Le choix d’un reproducteur ne se limite plus à sa beauté, à son pedigree récent, à ses tests de santé ou à sa disponibilité. Il intègre aussi sa contribution à la population : sa lignée est-elle rare ou déjà très représentée ? Sa parenté moyenne est-elle élevée ? Ses descendants risquent-ils d’accentuer une concentration ?
Ce changement oblige à accepter que le meilleur choix pour une portée ne soit pas toujours le choix le plus confortable. Par exemple, il peut parfois être plus utile de préserver une branche saine mais peu utilisée plutôt que de revenir vers une lignée déjà dominante.
Pour autant, cela ne justifie pas d’utiliser des chiens médiocres sous prétexte qu’ils sont rares. En effet, la santé, le comportement et la qualité restent non négociables. Mais la rareté utile devient un critère précieux parmi les critères importants.
Concrètement, l’éleveur ne regarde plus seulement ce qu’un mariage peut produire à l’échelle d’une portée. Il évalue aussi ce qu’il permet de préserver, de transmettre ou d’éviter de reconcentrer à l’échelle de la race.
09
Ce que change une vraie gestion de population canine pour les clubs de races
Pour les clubs de races, une vraie gestion de races canines impose de passer d’un rôle principalement normatif à un rôle de pilotage collectif. Le standard reste nécessaire, mais il ne suffit plus.
Le club de race devrait pouvoir également produire un tableau de bord simple : courbes des naissances et du nombre de portées, nombre de mâles utilisés, nombre de femelles utilisées, répartition des contributions, évolution de la population effective, lignées sous-représentées, lignées en déclin et tendances de consanguinité.
Ce travail peut être progressif car il n’exige pas d’imposer tous les mariages. D'abord il rend les déséquilibres visibles, puis il aide les éleveurs à comprendre les conséquences de leurs choix.
Le club de race peut aussi encourager des décisions utiles : limiter la surutilisation d’un reproducteur, valoriser les lignées saines peu représentées, documenter les descendants, harmoniser les méthodes de calcul et publier des synthèses accessibles.
La crédibilité d’un club de race ne repose pas seulement sur sa capacité à défendre le standard. Elle repose aussi sur sa capacité à montrer que la population qu’il défend reste viable, mesurable et pilotée.
10
Application à SaarGen : gérer avant, pendant et après l’ouverture
SaarGen s’inscrit dans cette logique : gérer avant, pendant et après l’ouverture. Un programme d’outcross ne commence pas avec la première portée. Il commence avec le diagnostic de population qui justifie l’étude d’une ouverture.
Avant l’ouverture, il faut comprendre la situation : diversité disponible, population effective, reproducteurs actifs, parenté moyenne, ROH, lignées sous-représentées, limites de la sélection interne et objectifs prioritaires.
Pendant l’ouverture, il faut choisir les donneurs comme des contributeurs génétiques, sanitaires, comportementaux et fonctionnels. Le donneur n’est pas seulement un chien extérieur. En effet, il devient une source de variation qui devra être suivie sur plusieurs générations.
Après l’ouverture, le travail devient encore plus important car il faut conserver l’apport introduit, créer plusieurs branches, éviter un retour trop rapide vers la population d’origine. Mais aussi suivre la santé, le tempérament, la fertilité, le type, les données génomiques ainsi que la contribution réelle des descendants.
La mission de SaarGen sera de transformer ce nouvel apport génétique en options utiles pour la population du chien-loup de Saarloos. Aussi, le mot “science” ne suffit pas. Seuls les indicateurs, les décisions traçables et le suivi des générations donneront du sérieux au programme.
11
Conclusion : préserver une race, c’est préserver sa capacité à continuer
Préserver une race ne consiste pas seulement à produire de bonnes portées aujourd’hui. C’est aussi maintenir assez d’options pour produire encore demain sans réduire à chaque génération le champ des possibles.
L’éleveur reste central. En effet, son regard, son exigence et son expérience sont irremplaçables. Mais dans une petite population, ces qualités doivent s’inscrire dans une lecture collective.
Les clubs de race ont également un rôle à jouer. Leur mission ne peut plus se limiter au standard, aux concours de beauté et à l’organisation administrative. Ils doivent également aider la population à être vue, mesurée et comprise.
La gestion des populations canines impose donc un changement de niveau :
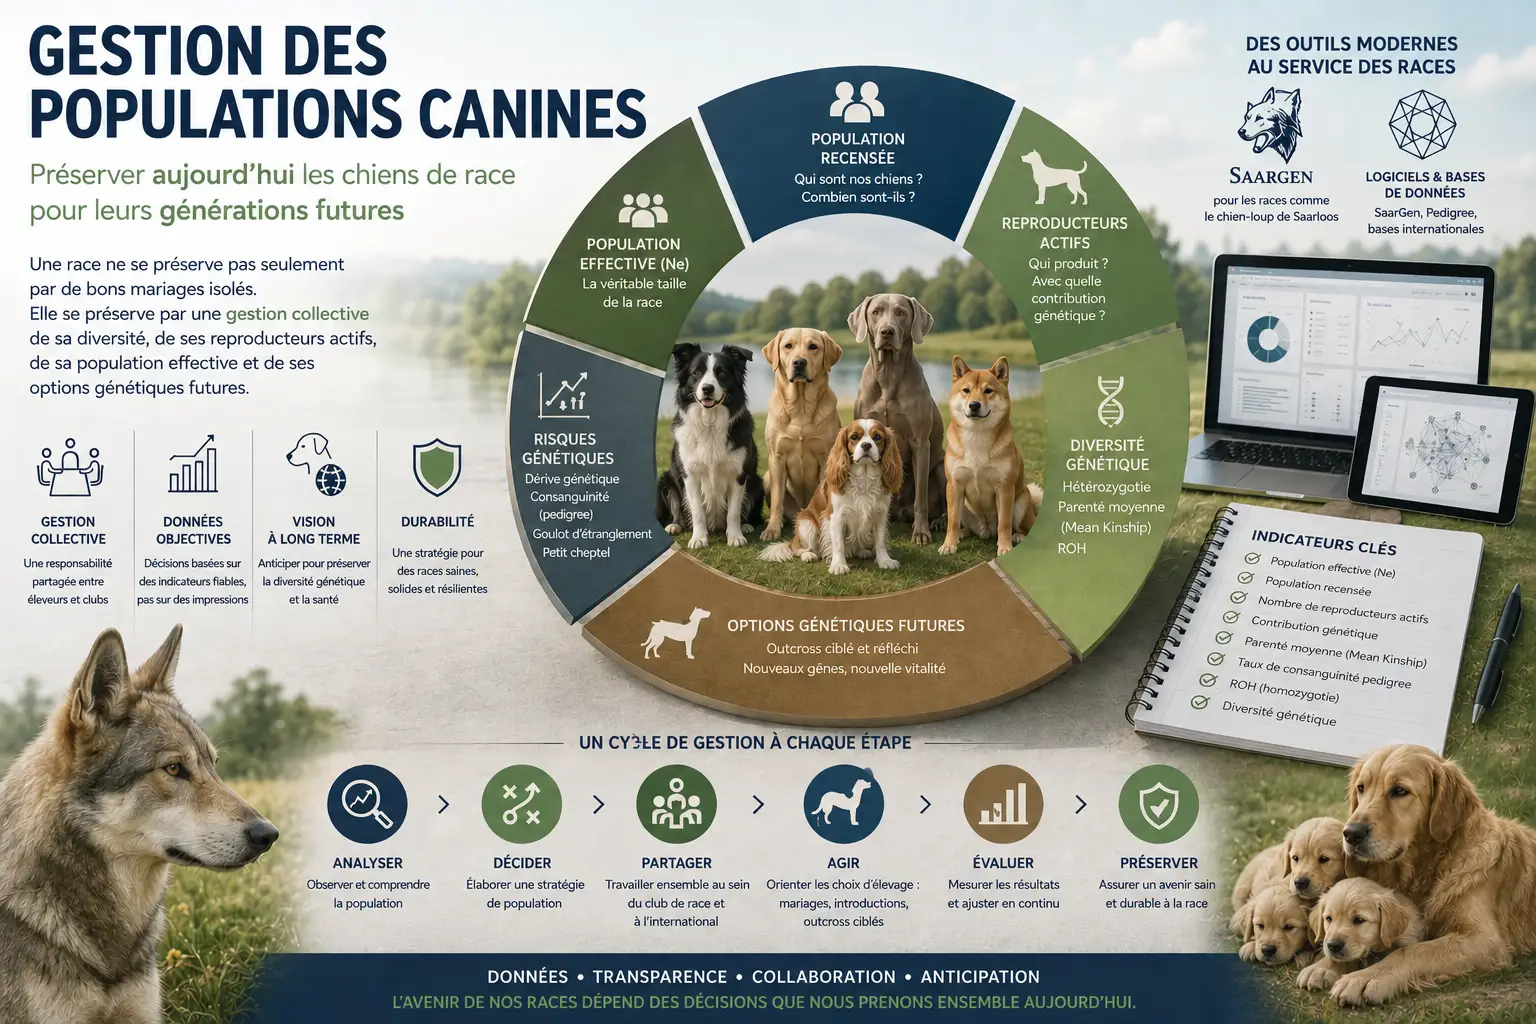
Avant de parler de mariages individuels, il faut comprendre ce qui se joue à l’échelle d’une race : combien de chiens existent, combien transmettent réellement, quelles lignées se maintiennent, lesquelles disparaissent et comment orienter les choix futurs.
Mini-glossaire
FAQ - Questions fréquemment posées
Que signifie Ne dans une population canine ?
Ne signifie population effective. Ce n’est pas le nombre total de chiens. C’est une taille théorique qui décrit combien de reproducteurs contribuent réellement, et avec quel équilibre des sexes, à la génération suivante. Plus Ne est faible, plus la dérive génétique et la hausse de consanguinité peuvent être rapides.
Quelle différence entre population recensée et population effective ?
La population recensée compte les chiens connus ou enregistrés. Alors que la population effective s’intéresse plutôt aux chiens qui reproduisent et donc transmettent réellement leurs gènes. Ainsi, une race peut avoir beaucoup de chiens recensés mais une population effective faible si peu de mâles et de femelles reproduisent, ou si certains contribuent beaucoup plus que les autres.
Une analyse de 215 races reconnues par le Kennel Club britannique a montré que la population effective ne se confond pas avec le nombre d’enregistrements, et que l’usage disproportionné de certains mâles constitue un facteur majeur d’augmentation de la consanguinité et de perte de diversité génétique (Lewis, Abhayaratne & Blott, 2015).
J'ai entendu parler de population idéale Hardy-Weinberg ? Qu'est-ce que c'est ?
Hardy-Weinberg est un modèle de référence. Il décrit une population théorique idéale.
Une population idéale répondrait à tous les critères suivants :
1. Le nombre de mâles et de femelles est égal et tous ont la capacité de procréer.
2. Tous les individus de cette population idéale reproduisent sans qu’il n’y ait plus de variations que celles prévues par le hasard.
3. Les combinaisons mâles/femelles sont aléatoires et non imposées par une quelconque sélection.
4. Le nombre d’animaux reproducteurs est le même d’une génération à l’autre (c’est-à-dire que la taille de la population est constante) et il n’y a pas d’immigration, d’émigration ou de mutation.
Dans une population idéale répondant aux critères énumérés ci-dessus, la taille de la population est égale à la taille de la population des reproducteurs. Mais dans la réalité, les populations de chiens de race ne remplissent pas les critères d’une population idéale (équilibre mâles / femelles, reproduction non aléatoire mais contrôlée etc.), et pour ces populations, le nombre de reproducteurs est inférieur au nombre total de chiens produits.
Si les populations réelles sont rarement idéales, quel est l’intérêt de connaître la taille de la population effective ?
La génétique des populations idéales est prévisible contrairement à la génétique des populations réelles. Comme les populations de chiens de race ne sont pas idéales, il faut alors déterminer la taille de leurs populations effectives afin d’établir des prévisions génétiques fiables.
Pourquoi une baisse de la population effective (Ne) augmente la dérive génétique ?
Cette vidéo explique très bien la relation entre la dérive génétique et la taille de la population effective.
Pourquoi l’équilibre mâles-femelles compte-t-il dans le calcul de la population effective (Ne) ?
Si la population effective d'une race de chien est de 1000 reproducteurs, on pourrait penser que tout va bien... Pourtant, si cette population de reproducteurs est en fait composée de 900 mâles pour 100 femelles, ce n'est plus la même chose...
Lorsque le nombre de mâles reproducteurs est très inférieur au nombre de femelles, la population effective baisse. Une approximation classique est : Ne = 4 × (Nm × Nf) / (Nm + Nf), où Nm est le nombre de mâles reproducteurs et Nf le nombre de femelles reproductrices. La population effective Ne n'est pas qu'une histoire de quantité, c'est aussi une histoire d'équilibre.
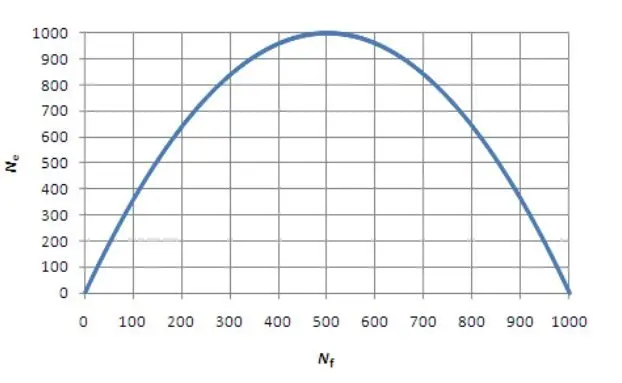
La courbe bleue illustre l'impact du déséquilibre des sexes dans une population de reproducteurs.
En abscisse : Nf (femelles reproductrices)
En ordonnée : Ne (population effective)
Exemple 1 : pour une population reproductrice de 1000 individus qui comprend 500 femelles (500 mâles déduits), Ne = 1000
Exemple 2 : pour une population reproductrice de 1000 individus qui ne comprend que 200 femelles (800 mâles déduits), Ne = 640.
Un bon niveau de population effective Ne suffit-il à prouver qu’une race est bien gérée ?
Non. Ne est un indicateur utile, mais il ne suffit pas à lui seul pour confirmer qu'une race est bien gérée. Ne doit être lu avec la diversité génétique, les ROH, la parenté moyenne (Mk), la contribution des lignées, la santé, le tempérament et la répartition réelle des reproducteurs. Encore une fois, l'indicateur magique seul, n'existe pas.
Un club doit-il imposer les mariages pour améliorer la population effective ?
Non. Mais par contre, il peut déjà agir en publiant des indicateurs, en signalant les déséquilibres, en limitant la surutilisation des mêmes reproducteurs et en encourageant la conservation de lignées saines sous-représentées. L’observatoire de population joue un rôle de conseil.
Aller chercher un reproducteur plus loin suffit-il à améliorer la population ?
Non. La distance géographique n’est pas une mesure de distance génétique. Une saillie étrangère n’est utile à la population que si le reproducteur apporte une contribution suffisamment distincte, si sa lignée n’est pas déjà très représentée et si ses descendants participent ensuite durablement à la reproduction.
Peut-on préserver une race uniquement en conservant plusieurs lignées d’élevage ?
Seulement si ces lignées sont réellement distinctes et gérées de manière équilibrée. Des lignées portant des noms différents peuvent partager les mêmes ancêtres dominants. La conservation doit donc être évaluée à partir des contributions génétiques, de la parenté moyenne et de la structure globale de la population, pas seulement à partir des affixes ou des pedigrees récents.
À quoi sert une PCA dans la gestion d’une race ?
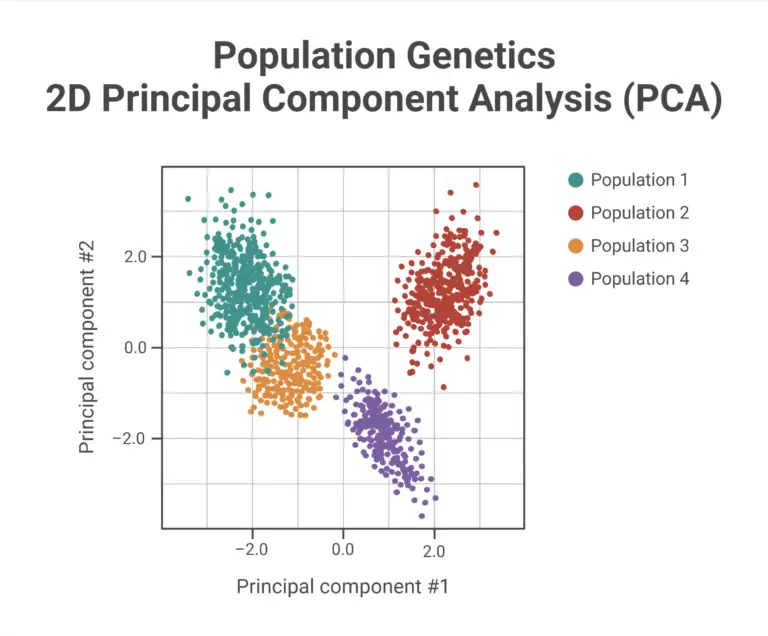
Une analyse en composantes principales permet de visualiser la structure génétique d’une population. Elle peut montrer si certains groupes sont génétiquement proches, séparés ou isolés. Elle ne dit pas quels chiens sont “meilleurs”, mais elle aide à comprendre comment la population est structurée.
L'exemple ci-dessous montre que la population 1 (verte) est génétiquement plus proche de la population 3 (orange) que des populations 2 (rouge) et 4 (violet). En fonction du contexte (que nous ne connaissons pas ici), nous pourrions interpréter que la population 2 (rouge) a dérivé génétiquement des 3 autres.
Références scientifiques
Les sources ci-dessous ont été utilisées pour la rédaction de cet article.
Les liens redirigeant directement vers les sites concernés sont intégrés dans le corps de texte de l'article.
1. Bannasch, D., Famula, T., Donner, J., Anderson, H., Honkanen, L., Batcher, K., Safra, N., Thomasy, S., & Rebhun, R. (2021). The effect of inbreeding, body size and morphology on health in dog breeds. Canine Medicine and Genetics, 8(1), 12. DOI : 10.1186/s40575-021-00111-4.
2. Calboli, F. C. F., Sampson, J., Fretwell, N., & Balding, D. J. (2008). Population structure and inbreeding from pedigree analysis of purebred dogs. Genetics, 179(1), 593-601. DOI : 10.1534/genetics.107.084954
3. Falconer, D. S., & Mackay, T. F. C. (1996). Introduction to Quantitative Genetics. Longman.
4. Frankham, R., Ballou, J. D., & Briscoe, D. A. (2010). Introduction to Conservation Genetics. Cambridge University Press.
5. Hardy, G. H. (1908). Mendelian proportions in a mixed population. Science, 28(706), 49-50.
6. Kardos, M., Luikart, G., & Allendorf, F. W. (2015). Measuring individual inbreeding in the age of genomics: marker-based measures are better than pedigrees. Heredity, 115(1), 63-72. DOI : 10.1038/hdy.2015.17.
7. Leroy, G. (2011). Genetic diversity, inbreeding and breeding practices in dogs: results from pedigree analyses. The Veterinary Journal, 189(2), 177-182. DOI : 10.1016/j.tvjl.2011.06.016.
8. Meuwissen, T. H. E., & Luo, Z. (1992). Computing inbreeding coefficients in large populations. Genetics Selection Evolution, 24, 305-313. DOI : 10.1186/1297-9686-24-4-305.
9. Meyermans, R., Gorssen, W., Buys, N., et al. (2020). How to study runs of homozygosity using PLINK? A guide for analyzing medium density SNP data in livestock and pet species. BMC Genomics, 21, 94. DOI : 10.1186/s12864-020-6463-x.
10. Weinberg, W. (1908). Über den Nachweis der Vererbung beim Menschen. Jahreshefte des Vereins für vaterländische Naturkunde in Württemberg, 64, 368-382.
11. Windig, J. J., & Doekes, H. P. (2018). Limits to genetic rescue by outcross in pedigree dogs. Journal of Animal Breeding and Genetics, 135(3), 238-248. DOI : 10.1111/jbg.12330.
12. Lewis, T. W., Abhayaratne, B. M., & Blott, S. C. (2015). Trends in genetic diversity for all Kennel Club registered pedigree dog breeds. Canine Genetics and Epidemiology, 2, 13. DOI: 10.1186/s40575-015-0027-4.